(Rough) Translator

07 marzo 2019

La filogenesi dei Robot Giapponesi Classici (1970-1980) basata sulla morfologia cefalica

La documentazione fossile dei grandi robot giapponesi è lacunosa ed imparziale. A parte una forma molto basale risalente alla parte più bassa del Periodo Shōwa (Gakutensoku), risalente a 47 milioni di minuti fa, avente una morfologia molto primitiva e del tutto priva di caratteri tipici del clade Mechanida, il record fossile dei robot è noto unicamente nella parte superiore del Periodo Shōwa e persiste poi nell'attuale Periodo Heisei. 
Intorno a circa 24 milioni e mezzo minuti fa, il registro fossilifero giapponese documenta un aumento esponenziale di resti di robot, di varie dimensioni e morfologie. A questa improvvisa esuberanza robotica è stato dato il nome di Esplosione Mechambriana, e segna il passaggio dal Premechanico al Fanerobotico.
La grande abbondanza e variabilità dei robot durante la prima parte del Fanerobotico ha generato accesi dibattiti tra i paleorobotici ed i robogenetisti. In particolare, mentre le forme di robot più recenti sono classificabili in un numero basso e definito di cladi, la sistematica e la tassonomia dei taxa dell'Età dell'Oro (tra 24 e 20 milioni di minuti fa) è particolarmente ostica e problematica, data la complessa combinazione di elementi ognuno dei quali, tradizionalmente, presente in uno solo dei cladi recenti.

Fig, 1. Diagramma schematico dei cephala dei 20 Mechanida inclusi nell'analisi. Il numero associato al nome corrisponde all'anno di prima comparsa nel registro fossilifero. (Qualcuno può aiutarmi a recuperare la fonte di questa bellissima immagine?)

In questo studio, tentiamo di risolvere la complessa sistematica dei Mechanida del Fanerobotico Inferiore usando i metodi dell'analisi filogenetica basata sulla massima parsimonia. L'analisi ha determinato la distribuzione di 18 caratteri morfologici binari che descrivono caratteristiche del cephalon dei principali Mechanida basali (Fig. 1). Il "proto-mecha" Gakutensoku, sebbene non sia un vero Mechanida, è stato incluso in quanto probabile esempio della condizione ancestrale del clade, e usato come gruppo esterno per l'analisi.

Analizzando la matrice per mezzo della parsimonia come strategia di inferenza, risulta il seguente diagramma filogenetico (Fig. 2), nel quale Steeljeegus (noto col nome vernacolare di "Jeeg Robot"), è il Mechanida più basale, sister group di Eumechanida, clade che a sua volta è formato da due cladi, Gundamidae e Mazingomorpha. All'interno di Mazingomorpha, Mazingidae (il clade tradizionalmente formato da Mazinga, Zetamazinga e Macromazinga) è parafiletico rispetto ai godsigmadini, che risultano la forma più derivata di mazingomorfi. L'analisi non supporta la monofilia di Asterobotus, le cui quattro specie sono collocate in tre cladi distinti ("Asterobotus" yanoshi come sister group di Gundamius, "Asterobotius" yntai come sister group di Gaikingus, e gli altri due Asterobotus a formare il clade più basale di Mazingomorpha).

Fig. 2. Analisi basata su algoritmi di parsimonia. La tassonomia segue il Codice Internazionale di Nomenclatura Mechanica.

Quanto è plausibile questo scenario filogenetico?
La domanda si può scomporre in due questioni in parte indipendenti:

1- L'albero ottenuto quanto si discosta da una distribuzione di alberi creati dalla stessa matrice ma assemblando i rami a caso? 
Ovvero, ci domandiamo quanto sia la robustezza dell'albero in relazione alla variabilità interna del campione di dati, e se tale robustezza si discosta da una mera casualità in base a test di tipo statistico. Risolvere questa domanda non ci da alcuna informazione sulla "realtà" dell'albero, ma solamente sulla significatività del risultato ottenuto rispetto all'insieme di tutti i possibili risultati che potremmo ottenere con il medesimo insieme di dati.

La risposta a questa domanda è immediata, utilizzando i test statistici inclusi nei più comuni programmi filogenetici: l'albero ottenuto è estremamente debole, e si discosta solo marginalmente da un campionamento del tutto casuale ottenuto dai medesimi dati. 
Questo è un elemento che occorre sempre ricordare quando avete una pubblicazione che include un albero filogenetico: quale è la robustezza statistica del risultato rispetto alle alternative che possiamo ottenere col medesimo insieme di dati? Questo è il motivo per cui chi vi propone scenari filogenetici bizzarri, sostenendo che essi siano più "plausibili" degli altri, ma senza però darvi modo di replicare tale risultato con test statistici, deve essere preso con molto scetticismo (ogni riferimento a blogger ossessionati con l'evoluzione dei rettili e degli pterosauri è ovviamente voluto).

2- Quale è la spiegazione evoluzionistica di questo scenario?
Ovvero, ci chiediamo quali fenomeni reali hanno generato la diversità dei robot negli anni '70. In questo caso, non esiste alcuna spiegazione evoluzionistica plausibile (e, difatti, il test di robustezza discusso nel punto sopra ci aveva già messo in guardia sulla inconsistenza del risultato). Ovviamente, i robot non evolvono darwinianamente, dato che sono prodotti culturali che vengono generati secondo leggi e meccanismi non-darwiniani, alcuni dei quali vagamente simili a processi evolutivi biologici, ma pur sempre processi che non sono vincolati alle leggi del processo evolutivo che plasmano gli organismi (e che possono essere analizzati, in parte, con le analisi filogenetiche). Elementi chiave per spiegare questa storia robotica, come la creatività ed il plagio, ad esempio, non rispondono alle leggi darwiniane, anche se possono vagamente ricordare le mutazioni e il trasferimento orizzontale di materiale genetico che sono invece fattori chiave dell'evoluzione biologica.
In breve, non esiste alcuna spiegazione storica ed evolutiva sensata in grado di giustificare quell'albero descritto nella Figura 2.

Questo post voleva quindi essere un simpatico gioco mentale, per stimolare la vostra curiosità su come si svolge una analisi filogenetica. La storia dei mitici robot della nostra infanzia (per chi, come me, è nato negli anni '70) è un fenomeno squisitamente culturale, e come tale deve essere analizzato.
L'idea che si possa ricostruire una "filogenesi dei robot" nel senso con cui noi determiniamo le filogenesi dei fossili, pertanto, è solamente un gioco. E come i robot con cui giocavamo da piccoli, non deve essere presa troppo sul serio, e goduta con leggerezza.

06 marzo 2019

Un approccio eco-geografico all'estinzione dei dinosauri (in Nord America)

 Tre tra i taxa di maggiori dimensioni nelle faune del Maastrichtiano terminale della Laramidia. (c) Davide Bonadonna
Il registro fossilifero è imperfetto e non omogeneo. 
Questo fatto, tanto ovvio quanto banale, permea ogni elemento della paleontologia, al punto che potremmo definire il paleontologo colui che tenta di estrarre informazione biologica da un filtro geologico. L'imperfezione del dato, e la necessità di tenere in considerazione le cause e gli effetti di tale imperfezione, ha raffinato la paleontologia, che da disciplina prettamente "qualitativa" è divenuta una scienza quantitativa e probabilistica. Chi legge questo blog fin dalle sue origini, lo sa bene. E non soprende quindi che l'autore di uno studio che introduce una nuova metodica di analisi delle dinamiche paleontologiche sia un lettore storico di questo blog.
Chiarenza et al. (2019) utilizzano una metodologia che combina il registro fossilifero, i dati paleoclimatici e la modellizzazione ecosistemica, per stimare la distribuzione e la durata degli habitat a dinosauri durante il Campaniano-Maastrichtiano del Nord America. L'obiettivo dell'analisi è testare se le faune a dinosauri alla fine del Cretacico fossero in declino prima dell'impatto col bolide il cui cratere giace nello Yucatan (come sostenuto da alcuni studi) oppure se invece non ci fosse in atto alcuna crisi nella diversità a dinosauri (come concludono analisi sistemiche). Nello studio, gli autori quantificano l'estensione degli habitat nelle regioni in cui le associazioni a dinosauri affiorano attualmente e ne stimano l'estensione continentale anche dove il registro fossilifero è andato perduto (a causa dell'erosione) oppure non è affiorante. 
Il risultato delle modellizzazioni indica che effettivamente si osserva una contrazione della abitabilità nelle zone fossilifere note, ma che questo trend non si riscontra quando si stima il fenomeno alla scala continentale. Aldilà della questione più accattivante relativa all'estinzione finale dei dinosauri, quello che a mio avviso è il pregio di questo studio è l'aver introdotto un metodo che permetta di stimare se il nostro record fossile sia o meno adeguato per sostenere argomenti alla scala globale. Lo studio di Chiarenza et al. (2019) conclude che il record dei dinosauri maastrichtiani del Nordamerica non può e non deve essere "letto alla lettera" per avere informazioni sulle dinamiche ecosistemiche alla fine del Cretacico in Nordamerica. A maggior ragione, non deve quindi essere preso come "dato grezzo" per qualsivoglia argomentazione alla scala globale. Pertanto, qualsiasi argomentazione "su larga scala" in merito alla storia finale dei dinosauri vogliate sostenere, essa non può prescindere da una stima di quanto sia "andato perduto" in termini di distribuzione geografica, filtro tafonomico, ed estensione di linee evolutive deducibili filogeneticamente: solo combinando tutti i parametri è possibile "pesare" la robustezza dell'attuale record fossilifero.
Per quanto le famosissime faune della Formazione del Hell Creek siano sovente usate come "paradigma" della fine dell'era dei dinosauri, esse probabilmente non sono sufficienti per comprendere gli ultimi dinosauri del Nord America (in particolare) né dell'intero pianeta (in generale). 

Chiarenza AA et al. 2019. Ecological niche modelling does not support climatically-driven dinosaur diversity decline before the Cretaceous/Paleogene mass extinction. Nature Communications 10: 1091.

05 marzo 2019

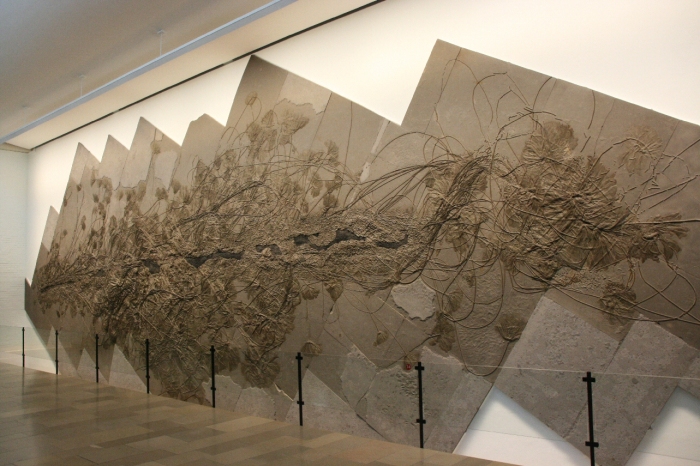
L'incredibile mostro ventennale dei mari giurassici


Un enorme fossile marino giurassico, una creatura tentacolare lunga 20 metri: Chtulhu? (fonte: dinosaurpalaeo.wordpress.com)


I mari del Giurassico Inferiore erano molto diversi da quelli di oggi. Generalmente, la diversità dei mari giurassici rispetto ai nostri viene percepita principalmente in termini faunistici. Plesiosauri basali, ittiosauri, ammoniti e qualche thalattosuco, al posto dei cetacei, tartarughe e squali moderni. Eppure, queste differenze faunistiche sono solo il riflesso secondario di ben più pregnanti differenze climatiche ed ecologiche.
I mari del Giurassico Inferiore erano più caldi di quelli attuali, e questo, combinato alla differente circolazione oceanica di un pianeta avente un unico supercontinente esteso latitudinalmente ed un singolo enorme oceano sul lato opposto del globo, produceva un mix letale per buona parte dei fondali marini, scarsamente ossigenati e quindi estremamente inospitali. L'ipossia (scarsità di ossigeno) che sovente degenerava in anossia (assenza di ossigeno) può essere poco dannosa per gli animali che nuotano e vivono lungo le parti alte della colonna d'acqua, ma è mortale per tutte le comunità che vivono sul fondale (bentoniche). E proprio l'ostilità della vita sul fondale deve essere tra i fattori che favorirono l'evoluzione nel Giurassico Inferiore di uno dei più spettacolari ed inusuali adattamenti dell'intera storia della vita. Una comunità formata da organismi immobili, ma che non si formava sul fondale, bensì sulla superficie del mare, e che si spostava alla velocità di 2-3 km all'ora!

Immaginate di nuotare in un caldo mare dell'inizio del Giurassico, a pelo dell'acqua. Ad un certo punto, scorgete in lontananza una creatura di grandi dimensioni, che si muove lentamente a pelo dell'acqua. Gran parte della creatura è immersa, e solamente la parte anteriore affiora in superficie. Mano a mano che vi avvicinate, comprendete che l'essere è davvero enorme, e raggiunge anche 20 metri di lunghezza. La sua superficie è ricoperta da un centinaio di lunghi tentacoli affusolati, ognuno con una estremità a forma di fiore. I tentacoli non sono distribuiti a caso, né in modo uniforme, ma si addensano sopratutto nella estremità sommersa, mentre sono poco abbondanti verso l'estremità emergente. E non sono soli: ancorati negli spazi liberi tra i tentacoli, decine e decine di grosse escrescenze simili a mandorle puntellano la maggioranza della creatura, la quale pare anche essere ricoperta da una mucillagine colloidale. Tutto attorno, orde di pesci infestano l'enorme creatura, mordicchiando le punte dei suoi tentacoli o inseguendo crostacei e altri organismi che si muovono alla base dei tentacoli.

Ora siete abbastanza vicini per risolvere l'enigma di questo essere alieno. Non si tratta di un animale, bensì di una enorme colonia di crinoidi (echinodermi col corpo simile ad un fiore) e bivalvi: tutte queste creature sono ancorate al tronco galleggiante di una enorme conifera, alla deriva nell'oceano!
I giganteschi zatteroni di crinoidi fissi ai tronchi di conifera sono una peculiarità del Giurassico Inferiore, e sono noti grazie a fossili eccezionali, come quello mostrato in alto, e rinvenuto negli scisti a Posidonia della Germania meridionale. Il centro della associazione è costituito da un tronco fossile di 20 metri sul quale erano ancorati un centinaio di crinoidi del genere Seirocrinus. Sono state proprio le ostili condizioni anossiche del fondale giurassico ad aver permesso la fossilizzazione di questi fossili eccezionali, che non hanno equivalenti moderni: quando il tronco, che imbarcava progressivamente acqua all'interno della sua struttura, era completamente saturo d'acqua, affondava, portando con sé il carico di organismi ancorati alla sua corteccia verso la morte nelle profondità prive di ossigeno. La caduta sui fondali anossici garantiva così la fossilizzazione indisturbata in un ambiente calmo e tranquillo perché ostile anche ai saprofagi e agli spazzini.

Le enormi dimensioni di queste colonie galleggianti sollevano un enigma ed un paradosso: quanto tempo era necessario perché queste colonie si formassero e crescessero fino a quelle dimensioni? La domanda porta al paradosso, perché il destino di ogni tronco galleggiante è di saturarsi d'acqua, decomporsi e, qualora sia ancoraggio di una colonia, collassare sotto il peso della colonia in crescita. Quindi, come risolvere il paradosso di una colonia che richiede tempo per formarsi su un supporto che è comunque "a tempo limitato", perché destinato ad affondare rapidamente (portando quindi la colonia stessa alla morte)?

Hunter et al. (2019) discutono l'enigma delle megacolonie galleggianti di crinoidi e propongono un modello che tiene conto della compresenza dei molluchi incrostanti (simili a ostriche) come fattore che “sigillerebbe” la corteccia, rallentando la penetrazione dell'acqua dentro il tronco, e che quindi allungherebbe la persistenza del tronco stesso sulla superficie, consentendo la crescita della colonia. Il modello stima che un grande tronco di conifera potrebbe persistere in acqua tra 2 e 20 anni: un range di tempo compatibile con le stime di crescita dei molluschi basate sulle ostriche attuali, che richiederebbero circa 10 anni per formare un assemblaggio simile a quello ipotizzato per questi fossili.

Ad una velocità di crociera di circa 2 km/h, un tronco galleggiante per almeno un decennio potrebbe quindi attraversare le enormi distese del grande oceano del Giurassico Inferiore, consentendo a questi echinodermi simili a fiori di raggiungere quella distribuzione globale che osserviamo nel record fossile di quel periodo.

04 marzo 2019

Morsi di giovane Tyrannosaurus (o forse no)

I segni di morsi sulle ossa di dinosauro sono utili per avere informazioni sulla meccanica del morso e sulle relazioni trofiche in questi ecosistemi estinti. Ma occorre anche evitare di speculare troppo su dati così rari e spesso ambigui.
Peterson e Daus (2019) descrivono due tracce di morso presenti su una vertebra caudale di Hadrosauridae dalla Formazione Hell Creek (Cretacico terminale) del Montana. Le tracce consistono nelle penetrazioni non rimarginate di denti compressi lateralmente sulla superficie ventrale di un centro vertebrale associato a resti parziali di uno scheletro. Gli autori ricavano i calchi dei due solchi, da cui ottengono la forma della parte di dente penetrata nei due fori (circa 5 mm). Assumendo che le due perforazioni documentino un singolo morso, gli autori confrontano le dimensioni e distanza tra denti consecutivi (o semi-consecutivi, ovvero, separati da un dente più giovane non del tutto sviluppato, come accade nella maggioranza dei theropodi, i cui denti eruttano in serie alternate) con quelle dei predatori medio-grandi dalla Formazione Hell Creek, e concludono che l'autore del morso fu un esemplare immaturo di Tyrannosaurus (di circa 11-12 anni, usando le curve di crescita stimate per questo taxon), e che, data la posizione dei segni sulla parte ventrale della coda, questo morso fu praticato durante la consumazione di una carcassa già in larga parte spolpata, quando buona parte della muscolatura era già stata asportata. 
Da ciò, Peterson e Daus (2019) argomentano sulla possibilità che esemplari immaturi di Tyrannosaurus, i quali non avevano ancora sviluppato la dentatura "incrassata" adatta a frantumare le ossa, potessero abitualmente consumare anche resti di dinosauri di dimensioni medio-grandi.

Sebbene il ragionamento svolto da Peterson e Dan (2019) sia abbastanza lineare e logico, esso si basa fondamentalmente sull'ipotesi che i due segni siano stati lasciati simultaneamente col medesimo morso, e che quindi siano la traccia di due denti consecutivi lungo la medesima arcata orale. Tuttavia, non vedo alcun motivo per negare questa alternativa: si tratta della traccia lasciata dal medesimo dente durante due morsi consecutivi sferrati dall'animale sulla carcassa di hadrosauride. I due segni di dente sono quasi uguali come dimensioni, e comunque, le differenze dimensionali dei segni possono semplicemente rispecchiare una diversa profondità raggiunta dal dente in due morsi successivi di potenza, inclinazione e posizione lievemente differenti. Se seguiamo questo secondo scenario, allora tutte le stime fatte per dedurre l'autore del morso (basate sulle distanze dei denti) vengono meno, e l'unica cosa che possiamo dire è che l'autore fu un theropode con denti compressi lateralmente. Notare che le dimensioni dei segni dei denti sono state confrontate solamente con i denti di due esemplari di Tyrannosaurus, uno "tardo-giovane" ("Jane") ed uno adulto ("Stan"): questo campione è a mio avviso troppo ridotto per poter escludere con sufficiente robustezza l'ipotesi che l'autore dei morsi possa essere un animale di qualsiasi dimensione intermedia tra questi due esemplari. 


Infatti, dal grafico riportato dagli autori nella figura 7 del loro articolo (sopra), appare evidente che la distanza tra il range delle dimensioni dei denti di "Jane" e quello di "Stan" è minore dei range dimensionali di ciascun animale: possiamo quindi escludere che includendo anche solo un terzo Tyrannosaurus, dimensionalmente più grande di "Jane" ma più piccolo di "Stan", non si vada a sovrapporsi ai due segni dei denti? No, non si può escludere. Quindi, la prova "dimensionale" per escludere un Tyrannosaurus subadulto (o comunque, più maturo di un giobane) è debole.

Ovvero, sebbene io concordi con gli autori che il probabile autore dei segni di morso fu un Tyrannosaurus, non ci sono sufficienti dati a disposizione per sostenere che l'autore fu un esemplare giovane (e per giunta, del quale si stima persino l'età), e quindi per dedurre qualche argomento sulla paleoecologia di Tyrannosaurus durante il passaggio da giovane ad adulto.

Bibliografia:
Peterson JE, Daus KN. 2019. Feeding traces attributable to juvenile Tyrannosaurus rex offer insight into ontogenetic dietary trends. PeerJ 7:e6573.

03 marzo 2019

Move over, Dinosauroid, it's the Age of the Halszkaraptoroid!

Questo post di zoologia speculativa è stato ispirato da una vignetta che mi è stata segnalata su Twitter, vignetta che a sua volta ha ispirato un meme piuttosto divertente sulla pagina Facebook del blog.

Il "dinosauroide" è il dinosauro speculativo, ed uno degli ipotetici "animali intelligenti" più famosi e discussi. Ne ho parlato in passato, e Darren Naish ne ha parlato in modo molto dettagliato ed articolato sulle varie iterazioni di TetZoo.

Qui vi propongo una ipotesi sicuramente accattivante, più dell'ormai abusatissimo Dinosauroide di Russell nelle sue varie iterazioni troodontidi. Ovvero, proviamo ad ipotizzare una versione halszkaraptorina del dinosauroide, ovvero, un dinosauro intelligente evoluto da Halszkaraptor.
Introduciamo "Halszkaraptoroid".

Una nota ufficiosa sul Quoziente di Encefalizzazione di Halszkaraptor
Vincent Beyrand, coautore con me nello studio su Halszkaraptor e autore delle segmentazioni 3D del cranio di Halszka ottenute dalle scansioni al sincrotrone, mi ha dato le misure del volume della cavità endocranica di Halszkaraptor, da cui ho dedotto che il quoziente di encefalizzazione di Halszkaraptor è nel medesimo ordine di grandezza di Archaeopteryx e Troodon. Quindi, se si ritiene legittimo ipotizzare il dinosauroide da un troodontide, possiamo fare una speculazione analoga da un halzkaraptorino.

Ecco come immaginerei l'anatomia del "Halszkaraptoroide", il theropode intelligente discendente da Halszkaraptor.

Dimensioni
Partiamo dal dinosauroide di Russell e Séguin (1982): esso ha una massa di 28 kg ed un quoziente di encefalizzazione di 7.1. Usando quella massa come stima per le dimensioni del Halszkaraptoroide, assumendo che non differisca significativamente nelle proporzioni femorali dagli altri maniraptori, risulta un animale che aveva il femore lungo circa 25 cm, comparabile quindi alle dimensioni di un eudromaeosauro come Velociraptor, e circa linearmente 4 volte più grande di Halszkaraptor (quindi, circa due metri dalla punta del muso alla punta della coda).

Sistema nervoso e sensoriale
Ovviamente, questo theropode deve avere il cervello molto sviluppato (condizione necessaria per essere un "dinosauroide" sensu lato). Tuttavia, a differenza del generico "allargamento" dell'encefalo che si ipotizza per il dinosauroide classico, Halszkaraptoroid deve aver preso un percorso evolutivo differente, "incentivato" dalle caratteristiche inusuale del sistema sensoriale del suo antenato reale. Se ammettiamo una pressione selettiva volta a potenziale il sistema nervoso in Halszkaraptor, dobbiamo immaginare un progressivo potenziamento della sensibilità a livello del nervo trigemino che innerva abbondantemente la regione rostrale del muso, e delle aree cerebrali deputate al processamento delle informazioni tattili. Questa particolare sensibilità a livello del muso ha quindi rappresentato una exaptation di Halszkaraptor nel momento in cui i suoi discendenti hanno progressivamente raffinato e potenziato la capacità di manipolare gli strumenti per mezzo delle mandibole. Questo ha probabilmente portato la dentatura nei discendenti "intelligenti" di Halskzaraptor a ridursi di dimensioni ed eventualmente a perdersi del tutto i denti, sostituiti da un lungo becco riccamente innervato alla sua estremità. Il becco quindi rappresenta (in analogia con versioni più recenti del dinosauroide) il principale organo manipolatore in Halszkaraptor. Inoltre, la lunghezza e flessibilità laterale del collo di Halskzaraptoroid lo ha reso un vero e proprio "braccio" con cui l'organo manipolatore (il becco) poteva agilmente modificare e modellare strumenti e utensili.
Di conseguenza, è plausibile che il cranio di Halszkaraptoroid abbia una regione posteriore ampia e bulbosa (per accogliere il grande cervello), ampie orbite rivolte anteriormente e un becco allungato e inclinato ventralmente, così da massimizzare la visione stereoscopica senza che sia intralciata dal muso.

Il collo
Confrontato con Halszkaraptor, il collo del suo discendente è più corto e dotato di vertebre eteroceliche, che aumentano la mobilità laterale del collo e della testa. La postura abituale del collo ricorda quella del pellicano, eretta e verticale, con la testa flessa verso il basso. 

L'arto anteriore
Halszkaraptoroid discende da animali semi-acquatici, nei quali l'arto anteriore è stato progressivamente specializzato come organo natatorio. L'animale ha quindi arti anteriori simili a pinne di pinguino, con tre artigli allungati simili alle pinne delle tartarughe marine. Il dito più esterno è il più lungo e robusto, e conferisce alla pinna una forma idrodinamica. La mani non sono coinvolte nella manipolazione degli oggetti, che è invece svolta dal sistema becco-collo e dai piedi.

L'arto posteriore e postura
Halszkaraptoroid ha una postura del corpo più verticale degli altri theropodi, il risultato della presenza, già nel suo antenato reale, di adattamenti a livello di bacino e femore per permettere una postura più verticale della schiena per controbilanciare il collo. Questo carattere di Halszkaraptor sarà un exaptation chiave che permetterà al suo discendente "intelligente" di evolvere una testa relativamente pesante e voluminosa in parallelo con l'espansione del cervello.
Il secondo dito del piede, corto e dotato di un ungueale iper-estensibile, nel Halszkaraptoroid si è specializzato in un dito analogo al pollice dei primati, e permette a questo theropode di impugnare strumenti con forza e precisione.

La coda
La coda di Halszkaraptoroid è uno dei caratteri chiave della sua biologia. Essa è relativamente muscolosa alla base, con una base appiattita nella zona intermedia, che è molto più mobile lateralmente rispetto agli altri maniraptori. Queste caratteristiche, un exaptation delle caratteristiche natatorie ancestrali di Halszkaraptor, nel Halszkaraptoroid permettono una postura "seduta sulla coda" (vagamente da canguro), usata come appoggio quando l'animale manipola gli oggetti con un piede e con il sistema mandibola-collo. L'animale utilizza quindi la coda come "zampa supplementare" quando impiega uno dei due piedi nella manipolazione e uso degli strumenti.


In conclusione, l'ipotetico Halszkaraptoroid ha evoluto un cervello molto sviluppato, un sistema sensoriale e adattamenti posturali coerenti con la sua capacità di manipolare e costruire oggetti. L'ecologia opportunistica e anfibia dei suoi antenati halszkaraptorini ha fornito i pre-requisiti idonei per evolvere un insieme di adattamenti coerenti per un animale in grado di costruire e manipolare oggetti usando mandibola e piede, di nuotare efficacemente grazie agli arti anteriori e di spostarsi in postura bipede come tutti gli altri theropodi. 
Grazie a questo mix di elementi vincenti, Halszkaraptoroid è il candidato ideale per diventare il signore e padrone del vostro mondo neomesozoico alternativo.

I paleoartisti sono invitati a realizzare delle ricostruzioni di Halszkaraptoroid!

Bibliografia:
Russell, D.A.Séguin, R. 1982. Reconstruction of the small Cretaceous theropod Stenonychosaurus inequalis and a hypothetical dinosauroid. Syllogeus 37, 1-43.