(Rough) Translator

02 dicembre 2022

AQUATIC DINOSAURS VS SEMI-AQUATIC DINOSAURS (aka A tale about Spinosaurs and Goose-raptors)


Un modo molto elegante di essere un dinosauro semi-acquatico  (fonte)

Che tempi avvincenti per chi studi i dinosauri carnivori! Nel giro di 24 ore abbiamo avuto la pubblicazione di un nuovo studio relativo alla controversa paleo-ecologia di Spinosaurus (Sereno et al. 2022) e la pubblicazione del nuovo halszkaraptorino Natovenator (Lee et al. 2022). Come spesso accade in questi casi, la rete si è scatenata, a volte in modo critico, a volte in modo divertente, in reazione a questi studi.

Penso sia doveroso fare chiarezza, perché leggo online alcuni fraintendimenti anche da parte di paleontologi, sulla questione di cosa, come e quanto fosse acquatico questo o quel dinosauro.

Sereno et al. (2022) hanno portato un contributo molto importante alla discussione perché esplicitamente distinguono il significato della parola "acquatico" da quella di "semi-acquatico". I termini sono spesso usati come sinonimi, o comunque intercambiabilmente, generando confusione.

Seguendo la definizione in Sereno et al. (2022):

ACQUATICO:

Un animale ha uno stile di vita acquatico quando è adatto a rimanere permanentemente, o comunque per la grande maggioranza del tempo, immerso in acqua. Un animale acquatico è quindi poco (o per niente) adatto a vivere fuori dall'acqua. Seguendo questa definizione, sono acquatici i cetacei e le tartatughe marine, ed ovviamente tutti i pesci.

SEMI-ACQUATICO:

Un animale ha uno stile di vita semi-acquatico se è adatto a rimanere temporaneamente in acqua ma conserva comunque la capacità di uscire attivamente dall'acqua e di svolgere parte della propria vita sulla terraferma. Un animale semi-acquatico quindi non è vincolato all'ambiente acquatico ma è anche adatto a sfruttare l'ambiente terrestre. Seguendo questa definizione, sono animali semi-acquatici gli ippopotami, i coccodrilli, le tartarughe palustri, molti anatidi e la maggioranza degli uccelli detti "acquatici". 

I pinguini sono un caso particolare, a metà strada tra una condizione "veramente" acquatica ed una semi-acquatica. (Non dobbiamo stupirci, perché le nostre categorie sono sempre una semplificazione del mondo reale).

Seguendo questi criteri, Sereno et al. (2022) mostrano che Spinosaurus non sia un animale (pienamente) acquatico bensì semi-acquatico, una conclusione in linea con la maggioranza degli studi precedenti, ma che "ridimensiona" alcune ipotesi proposte negli ultimi anni dagli studiosi del celebre esemplare marocchino.

Personalmente, non vedo una grande rivoluzione: condivido la distinzione terminologica proposta da Sereno et al. (2022) e non avevo mai pensato che Spinosaurus fosse "pienamente/totalmente" acquatico, né penso che lo pensassero gli autori degli studi sul neotipo di S. aegyptiacus (in ogni caso, io non devo fare l'avvocato difensore di nessuno).

Seguendo le categorie di Sereno et al. (2022), anche gli halszkaraptorini sono semi-acquatici. Questo è perfettamente coerente con quanto abbiamo sempre sostenuto fin dal primo studio del 2017 su Halszkaraptor, dato che l'animale era stato interpretato come "anfibio" (termine che significa "che ha due vite", una acquatica ed una terrestre, quindi sinonimo del termine "semi-acquatico" usato da Sereno et al. 2022).

Approfitto del post per rimarcare alcuni concetti sugli halszkaraptorini che continuano ad essere fraintesi da alcuni online:

1- L'ambiente deposizionale degli Halszkaraptorinae (formazioni Djadokhta e Baruungoyt) comprende sia facies formate in ambiente arido che facies formate in ambiente umido. Quindi, non è vero - come continuano a ripetere certi commentatori online - che questi ambienti fossero unicamente aridi e desertici. La presenza di depositi umidi implica una variabilità degli ambienti e la presenza di acqua. Ad esempio, a Uhkaa Tolgod (la località tipo di Halszkaraptor), abbiamo facies composte da argille e siltiti che sono esplicitamente interpretati come depositi formati in bacini d'acqua dolce all'interno del sistema di dune sabbiose (Dingus et al. 2008), un tipo di ambiente che oggi troviamo, ad esempio, in alcuni deserti della Namibia. La presenza di varie specie di ostracodi (invertebrati d'acqua dolce) in questi depositi suggerisce la presenza di piccoli laghi e stagni, perfettamente adatti per le esigenze di piccoli animali simil ad anatidi come Halszkaraptor.

2- Studi della sedimentologia e stratigrafia del Bacino del Nemegt indicano che le tre unità della Djadokhta, Baruungoyot e Nemegt non fossero tre momenti distinti del passato cretacico della Mongolia separati nel tempo, bensì tre differenti contesti ambientali e deposizionali esistiti contemporaneamente durante la lunga storia tardo-cretacico della regione del Gobi (Jerzykiewicz et al. 2021). Ovvero, le tre unità rappresentano tre diversi ambienti, collegati tra loro ed in continuità geografica, tre parti del medesimo sistema di oasi umide e sistemi di dune sabbiose. Lo studio in questione propone una interessante soluzione al "paradosso ecologico degli halszkaraptorini" dato che mostra come la presenza e abbondanza delle diverse specie di dinosauro nelle tre unità menzionate sopra non sia una prova di "adattamento locale" alle sole condizioni di una singola unità, ma sia un artefatto tafonomico. Ovvero, dobbiamo concludere che gli Halszkaraptorinae in vita fossero presenti in tutte le zone rappresentate da queste tre unità, sia nei contesti umidi (=Nemegt) che in quelli intermedi (=Baruungoyot), sia in quelli più asciutti (=Djadokhta), ma che a livello fossile solamente gli animali che si avventuravano nelle dune sabbiose djadokhtiane avessero qualche possibilità di preservarsi fino a noi, a causa del regime tafonomico sfavorevole per gli scheletri di piccole dimensioni che caratterizza i depositi nemegtiani rispetto a quelli baruungoytiani e diadokhtiani. Riassumendo, Halszkaraptor non era un abitante esclusivo delle dune sabbiose, ma piuttosto un opportunista esploratore dei contesti sia umidi che aridi, ma che solo in questi ultimi (in particolare, nelle dune sabbiose che collassavano) poteva eventualmente fossilizzare nelle condizioni idonee alla preservazione del suo piccolo e delicato scheletro. 

3- Nonostante ci siano rappresentazioni paleo-artistiche di Halszkaraptor (e ora, anche di Natovenator) che lo rappresentano intento ad inseguire il pesce nuotando in immersione, nel nostro studio del 2017 (Cau et al. 2017) non abbiamo mai proposto uno stile di nuoto così estremo. Nello studio del 2017, diciamo esplicitamente che Halszkaraptor probabilmente usava gli arti anteriori per manovrare in acqua, ma non sosteniamo che fosse un nuotatore efficiente come un pinguino o un cormorano, né che usasse le pinne come organo propulsivo. Per sostenere ciò occorrerebbe un'analisi biomeccanica rigorosa ed una completa conoscenza della regione pettorale, ovvero ci servirebbe uno scheletro meglio preservato di quello a disposizione. In ogni caso, non occorre un tale modello locomotorio per spiegare l'ecologia semi-acquatica di Halszkaraptor. La mia ipotesi preferita è che Halszkataptor fosse un nuotatore relativamente lento, e di superficie, che usava il lungo collo affusolato e molto mobile per foraggiare in acque basse, rovistando sul basso fondale alla ricerca di molluschi ed invertebrati d'acqua dolce. Un'animale che ricorda nello stile di vita un cigno come quello che apre il post, e non un pinguino. 

4- La compattezza delle ossa in Spinosaurus e Halszkaraptor. Le ossa lunghe di Spinosaurus sono molto più compatte di quelle degli altri theropodi, e ciò è stato considerato una prova di uno stile di vita più spiccatamente acquatico (Fabbri et al. 2022). Sereno et al. (2022) propongono una interpretazione alternativa di questo elemento, sostenendo che fosse legato alla peculiare dimensione ridotta degli arti, per conservare robustezza nel sostenere il peso corporeo, dato che le vertebre di Spinosaurus non mostrano una simile anatomia interna e sono cave internamente. Indipendentemente da come interpretare questo fenomeno, le ossa di Halszkaraptor sono cave internamente come nella maggioranza dei theropodi. Questo significa che quindi non fosse in qualche modo acquatico? Ovviamente, no: una simile cavitazione nelle ossa si osserva anche in molti uccelli acquatici, come anatidi e altre forme piscivore, i quali sono comunque perfettamente adatti a vivere in acqua e a nutrirsi immergendosi per brevi momenti. Dato che io sostengo che Halszkaraptor fosse un nuotatore di superficie, che galleggiava a pelo d'acqua e che immergesse soprattutto il collo e non avesse uno stile di nuoto da pinguino, non vedo problemi nel suo scheletro leggero e pneumatizzato. Anzi, lo scheletro cavo aiutava il galleggiamento e quindi era consono al suo stile di foraggiamento. La questione della cavitazione delle ossa è un problema per chi sostiene uno stile di vita (pienamente) acquatico in grado di immergersi a lungo, ma, ripeto, noi non abbiamo mai sostenuto ciò per Halszkaraptor: esso era semi-acquatico (non era "totalmente acquatico") e mostra uno scheletro da animale semi-acquatico, con ossa cave e non compatte.

Spero che questo post chiarisca i punti controversi e fraintesi su questi studi, e sugli halszkaraptorini in particolare.

Purtroppo, vedo ancora persone che attaccano le nostre analisi come se noi avessimo dichiarato che Halszkaraptor fosse un pinguino che viveva nel deserto sabbioso del Sahara... idea che è anni luce di distanza da quello che invece ritengo sia la corretta interpretazione di tutte le evidenze su Halszkaraptor, Natovenator e sugli ambienti deposizionali del Bacino del Nemegt.


01 dicembre 2022

Natovenator, un nuovo halszkaraptorino idrodinamico! [edit]


Cranio di Natovenator (da Lee et al. 2022)

Tra cinque giorni, sarà il quinto compleanno di Halszkaraptor.

Fin dalla sua pubblicazione, la "piccola Halszka" ha generato molta attenzione, curiosità, ma anche controversie. Le modalità della sua scoperta (essa non è il risultato di uno scavo scientifico ma il recupero dell'esemplare dal mercato internazionale dei fossili) e la bizzarra anatomia di questo fossile hanno, legittimamente, spinto alcuni ad essere cauti e critici verso la nostra interpretazione ecologico-funzionale. Sebbene avessimo dettagliatamente dimostrato tramite scansioni tomografiche che il fossile non era una chimera artificiale, l'idea che questo dinosauro fosse una specie semi-acquatica, forse persino adattata al nuoto, ha sollevato alcuni dibattiti, compreso un articolo nel 2019 di confutazione della nostra ipotesi, articolo nei confronti del quale io pubblicai nel 2020 un articolo di risposta.

Tuttavia, la scienza non è una semplice competizione retorica, una gara a chi sa convincere il maggior numero di ascoltatori grazie alla propria arte oratoria. La scienza è discussione di evidenze scientifiche. Se Halszkaraptor è un dinosauro genuino, devono esistere anche altri esemplari. Se Halszkaraptor è acquatico, devono esistere ulteriori prove a sostegno di tale scenario oltre a quelle visibili nel primo fossile. La loro scoperta, più di qualunque argomentazione (per quanto logicamente valida) è ciò che consolida e sancisce la robustezza delle nostre ipotesi, la loro validità scientifica. 

Questa scoperta, tanto necessaria e utile al fine di risolvere il dibattito, è arrivata. Io ne ero a conoscenza da alcuni anni, dato che essa fu annunciata in forma preliminare ad un congresso internazionale alcuni anni fa, sotto forma di poster, poster che mi fu poi inviato dal primo autore di tale studio, il paleontologo sud-coreano Sungjin Lee. Ovviamente, non potevo parlarne prima della conclusione dello studio e della sua pubblicazione ufficiale. 

Oggi, lo studio completo di questo nuovo fossile è pubblicato ufficialmente (Lee et al. 2022). Gli autori descrivono un esemplare semi-articolato e parzialmente conservato di un nuovo halszkaraptorino scoperto nel 2008 durante una spedizione paleontologica nella Formazione Baruungoyot di Hermiin Tsav, nel sud della Mongolia, ed istituiscono Natovenator polydontus.

L'esemplare comprende il cranio quasi completo, buona parte del collo e del torace, parte degli arti anteriori, porzioni di bacino, gamba e coda. Molti elementi del fossile sono comparabili con Halszkaraptor, e confermano definitivamente che "la piccola Halszka" non è una chimera artificiale: le peculiari caratteristiche del cranio, del muso, della dentatura, del collo, dell'arto anteriore, della coda e del piede di Halszkaraptor sono presenti anche in Natovenator. Inoltre, la scoperta del fossile da parte di un team di paleontologi durante una spedizione in Mongolia conferma l'ipotesi che anche Halszkaraptor provenga dalla regione del Gobi. La differente preservazione di Natovenator (parzialmente articolato) rispetto ad Halszkaraptor (completo ed articolato) è in linea con le tipiche differenze di tafonomia dei theropodi di piccola dimensione rinvenuti nella formazione Baruungoyot rispetto a quelli dalla Djadochta, confermando l'ipotesi che Halszkaraptor provenga dalla seconda delle due unità geologiche.

Come in Halszkaraptor, anche Natovenator ha una peculiare conformazione del muso, platirostrale, dalla forma "a missile" in vista dorsale, con i premascellari appiattiti e fusi, un numero esageratamente alto di denti rostrali (persino più numerosi che nei già numerosi denti di Halszkaraptor: 13 per ciascun premascellare, più del triplo della norma theropodiana!), vertebre del collo allungate (ma in questo caso, il collo risulta un po' più corto di quello di Halszkaraptor), ed una riduzione dei forami pneumatici nelle vertebre (persino più ridotta che in Halszkaraptor). Natovenator condivide la particolare forma delle zigapofisi del collo tipica di Halszkaraptor, e mostra le medesime specializzazioni nella mano e nell'avambraccio viste nella "piccola Halszka". La coda presenta le medesime modifiche nelle vertebre anteriori viste in Halszkaraptor e Mahakala. Inoltre, Natovenator conferma la nostra ricostruzione della narice in Halszkaraptor come relativamente allungata posteriormente (un elemento che ci fu contestato nello studio del 2019 a cui ho accennato prima). La parte posteriore del cranio, nella zona occipitale, è simile a Mahakala (di questo ultimo non abbiamo il muso), mentre il piede è distinguibile sia da Halszkaraptor che da Hulsanpes.

Natovenator e comparazione tra la sua gabbia toracica e quella di altri theropodi (da Lee et al. 2022)

L'elemento più importante di Natovenator è la preservazione della gabbia toracica (che invece è quasi completamente mancante nello scheletro di Halszkaraptor), la quale mostra una bizzarra conformazione delle coste dorsali. Esse descrivono una curva larga e bassa quando sono viste di fronte, una conformazione che è tipica di animali semi-acquatici e che è stata individuata anche in alcuni spinosauridi. Inoltre, l'articolazione delle coste dorsali con le vertebre non è ventro-laterale, come normalmente si osserva nei theropodi, ma inclinata posteriormente: il risultato è una gabbia toracica bassa fusiforme, diversa da quella tipica degli animali di terraferma, ma caratteristica di specie semi-acquatiche nuotatrici, come molti uccelli piscivori e mammiferi come l'ornitorinco. Ovvero, la gabbia toracica di Natovenator è chiaramente un adattamento prodotto dalla selezione naturale per migliorare il suo assetto idrodinamico, è un adattamento per migliorare il movimento in acqua! 

Nel caso non sia chiara la portata evoluzionistica di questa scoperta: per avere una gabbia toracica con una tale modifica strutturale (ben più radicale di qualche modifica nei denti o nelle falangi, qui stiamo parlando della intera gabbia toracica che contiene gli organi vitali e che partecipa alla ventilazione polmonare), è necessario che questi animali siano stati selezionati attivamente dalla costante frequentazione dell'ambiente acquatico, e per lunghi tempi evoluzionistici. Ovvero, l'habitat acquatico deve essere stato abitato a lungo dalla linea halszkaraptorina, ben prima della comparsa delle quattro specie note finora dalla Mongolia. E non solo "abitato" in modo passivo, ma anche frequentato attivamente, al punto da plasmare il loro sistema scheletrico e locomotorio. 

In una frase:

Questi dinosauri nuotavano attivamente!

Confronto tra l'inclinazione delle coste toraciche in un uccello terricolo (Casuarius, A) ed uno nuotatore (Alca, B). Nel terricolo, le coste sono perpendicolari all'asse del torace; nel nuotatore, le coste sono inclinate posteriormente rispetto all'asse del torace (frecce rosse). In basso, due dromaeosauridi, Shri Tyrannosaurus (C) e Natovenator (D), entrambi in vista ventrale. Notare che Natovenator ha l'assetto costale da nuotatore. Immagini in A e B da Tickle et al. (2007).


Questo ultimo dettaglio morfofunzionale non era menzionato nel poster preliminare di Lee et al. del 2019, ed è stato per me una bellissima sorpresa, dato che va ben oltre le mie più ottimistiche speranze di avere ulteriori sostegni all'ipotesi che avevamo proposto cinque anni fa per spiegare l'anatomia in Halszkaraptor. Questa nuova scoperta di un così radicale adattamento scheletrico alla locomozione acquatica, scoperta inattesa, ma perfettamente coerente con l'interpretazione funzionale che avevamo dato nel 2017, sancisce in maniera definitiva l'ipotesi che Halszkaraptorinae è un clade di dromaeosauridi adattati ad uno stile di vita semi-acquatico, capaci sia di muoversi sulla terraferma che di nuotare in acqua per foraggiare sia al suolo che in contesti acquatici.

Natale è arrivato in anticipo di 3 settimane!

E non dimenticate di visitare il podcast per ascoltare l'episodio dedicato a Natovenator.

PS: riflettendo su questo nuovo studio, mi è tornata alla mente un'idea, molto speculativa quando la elaborai, ispirata dalla bizzarra morfologia della furcula di Halszkaraptor. In breve, l'articolazione tra furcula e sterno in Halszkaraptor mi ricordarono vagamente l'impianto pettorale di certi rettili acquatici, e questo mi fece immaginare, in forma del tutto ipotetica, se la gabbia toracica mancante di Halszkaraptor non fosse stata, chissà, forse in qualche modo appiattita come quella di una tartaruga marina. Siccome non avevo solidi argomenti per elaborare quell'idea, non la sviluppai né la menzionai nell'articolo del 2021, ma alla luce delle informazioni ricavate da Natovenator, forse c'era qualcosa di sensato in quella speculazione...


Bibliografia:

Lee S. et al. 2022. A non-avian dinosaur with a streamlined body exhibits potential adaptations for swimming. Communications Biology https://doi.org/10.1038/s42003-022-04119-9.


20 novembre 2022

Daurlong Strangecrest or: How I Learned to Stop Overreading and Love Taphonomy


In alto, cranio dell'olotipo di Daurlong. In basso, foto (A) e disegno schematico (B) del cranio di Zhenyuanlong. In B, in rosso è indicato il nasale e parte di un lacrimale, le cui dislocazioni rispecchiano la "cresta" di Daurlong.

L'eccezionale preservazione dell'olotipo di Daurlong lascia tutti, giustamente, estasiati. Ma questo non deve farci dimenticare che un fossile è pur sempre un prodotto di processi geologici combinati a elementi biologici, e non è mai una "radiografia" genuina di un animale fresco. Ciò vale anche nei casi, come Daurlong, in cui l'animale sembra veramente "fresco di funerale" (perdonate il cinismo).

Un elemento del fossile che sicuramente ha attirato l'attenzione e suscitato legittima curiosità online fin dalla immediata pubblicazione è la "cresta" che appare sul muso dell'animale. Ad una visione immediata, "letterale", Daurlong sembra possedere una cresta nasale triangolare che corre lungo la superficie dorsale del muso.

Tuttavia, l'analisi dettagliata del fossile e la comparazione con altri esemplari, smentiscono questa interpretazione. Tutto ci porta a considerare la "cresta" come un artefatto della fossilizzazione, a negarle una origine biologica.

Durante lo studio del fossile, anche noi autori abbiamo attentamente valutato l'ipotesi che l'animale avesse una cresta nasale, ma alla luce di vari elementi, sia geologici che biologici, abbiamo scartato tale interpretazione.

1. La parte dorsale del cranio di Daurlong ha subìto una erosione della superficie esterna: questo è evidente dall'analisi coi raggi UV, che mostra una bassa fluorescenza della parte dorsale del cranio rispetto a quella ventrale. Il grado di fluorescenza delle ossa è legato alla preservazione della superficie esterna originaria (più fluorescenza = migliore preservazione). La cresta è priva di fluorescenza, e risulta quindi osso deteriorato ed eroso in superficie. Ciò è confermato anche dai campionamenti di materiale osseo e dall'analisi al microscropio elettronico.

2. La parte anteriore della regione nasale, a livello dell'articolazione con il premascellare, è danneggiata e mancante. Dalle foto non si deduce, ma c'è uno "scalino" osseo tra la "cresta" e la punta del muso, ovvero, manca un pezzo della parte laterale del premascellare, quella che articola col nasale. Ciò indica che non è presente l'originaria articolazione tra le due ossa.

3. Un altro dromaeosauride dal Biota Jehol, Zhenyuanlong, mostra una marcata dislocazione dei nasali e dei lacrimali rispetto al resto del cranio: tale dislocazione, evidente per il modo con cui l'esemplare è fossilizzato, produce una versione "estrema" della cresta di Daurlong. Ovvero, il nasale dell'esemplare di Daurlong è chiaramente ad uno stadio iniziale nel processo di dislocazione che è invece più avanzato nell'esemplare di Zhenyuanlong.

La spiegazione più parsimoniosa che ricaviamo da questi elementi è che la "cresta" di Daurlong sia solamente il tetto del nasale (e parte del lacrimale destro) che si sono in parte dislocati dorsalmente durante la decomposizione della carcassa. In origine, il tetto del nasale era piatto, senza creste.

NOTA DEL 28 NOVEMBRE 2022:

Se pensate che Daurlong abbia delle creste lacrimali o nasali, siete liberi di crederlo, ma in tal caso siete invitati a pubblicare le vostre ipotesi su articoli scientifici su riviste paleontologiche internazionali soggette a peer-review. A giocare con Photoshop siamo bravi tutti, ma pubblicare uno studio scientifico è una cosa ben più seria.

19 novembre 2022

Daurlong wangi, un dromaeosauride con la traccia dell'intestino!


L'eccezionale preservazione di Daurlong e, a sinistra, la regione intestinale.


Da più di 25 anni, l'Eldorado mondiale dei dinosauri ha un nome: Biota Jehol. Questo termine indica una serie di località fossilifere, risalenti al Cretacico Inferiore (in particolare, l'intervallo Barremiano-Aptiano, ovvero circa 125-115 milioni di anni fa), localizzate nel nord-est della Cina, in particolare nella provincia del Liaoning. Il Biota Jehol è l'insieme delle specie fossili, sia animali che vegetali, rinvenute in queste località. Grazie a speciali condizioni ambientali e geologiche, molto rare, le specie dal Biota Jehol sono preservate con un dettaglio eccezionale: scheletri completi, articolati, e in molti casi associati a tracce delle parti molli, in particolare la pelle (compreso il piumaggio). Dinosauri ormai divenuti iconici, come Caudipteryx, Microraptor, Sinosauropteryx e Yutyrannus, provengono da questo biota. Sebbene i dinosauri siano senza dubbio i più famosi rappresentanti del Biota Jehol, la ricchezza delle faune rinvenute in queste località va ben oltre Dinosauria: insetti, pesci, mammiferi, pterosauri, anfibi, tutti in eccellente stato di conservazione, in grado di darci un quadro molto dettagliato della biodiversità dell'Asia orientale intorno a 120 milioni di anni fa.

Una località del Biota Jehol, scoperta alcuni anni fa, è particolare: il suo nome, traducibile dal cinese all'inglese come “Pigeon Hill” (la “collina del piccione”), non si trova nel Liaoning, ma più a nord, nella provincia cinese della Mongolia Interna. Oltre ad essere attualmente il sito più a nord del Biota Jehol, Pigeon Hill è anche particolare per l'eccezionale abbondanza di fossili di anfibi: si stima che dal sito siano stati estratti almeno 10 mila esemplari di rane, tritoni e salamandre fossili, di varie specie, spesso completi e perfettamente articolati.

Il primo dinosauro battezzato a Pigeon Hill è un uccello, un ornithuromorfo, alla cui descrizione e studio ho partecipato anche io: Khinganornis, pubblicato nel 2020. Lo studio su Khinganornis è uno di una serie di ricerche che da alcuni anni sto svolgendo in collaborazione con Wang Xuri, paleontologo di Pechino specializzato principalmente in uccelli mesozoici. Un nuovo studio frutto della mia collaborazione con Wang, esce oggi su Scientific Reports (Wang et al. 2022), e questa volta non descrive un uccello, bensì il primo dinosauro non-aviano da Pigeon Hill. Il post di oggi è dedicato alla storia di questo esemplare eccezionale.

Nel settembre del 2020, Wang mi inviò una serie di fotografie di un dinosauro rinvenuto a Pigeon Hill e che era in fase di preparazione (ovvero, di “liberazione” dalla matrice rocciosa che lo conserva). L'esemplare risultò essere un dromaeosauride completo, in ottimo stato di conservazione, articolato e con tracce evidenti di parti molli, in particolare, il piumaggio visibile lungo la parte dorsale del cranio e della intera colonna vertebrale.

Inoltre, erano visibili delle zone di colore bluastro-rugginoso, a livello del cranio, della zona addominale e delle estremità di pube e ischio. Abbiamo analizzato l'esemplare con i raggi UV, che hanno mostrato che le differenti colorazioni nel cranio e sugli arti sono legate al grado di preservazione della superficie ossa originaria (le parti color bruno sono quelle più erose), mentre restavano più misteriose le macchie nella zona addominale e pelvica. Abbiamo quindi prelevato dei campioni di queste incrostazioni addominali e le abbiamo analizzate al microscopio elettronico, dove sono risultate essere formate da una matrice di microcristalli dal diametro di 1-3 micron. Nonostante non siano risultate tracce di melanosomi, la texture dei microcristalli mi ha immediatamente ricordato quella dei campioni di tessuto prelevati da Scipionyx. Inoltre, l'estensione della macchia bluastra addominale ricalca fedelmente l'estensione dell'intestino fossilizzato in Scipionyx: essa parte a livello della nona dorsale, si estende ventralmente raggiungendo i gastrali tra la decima e la dodicesima dorsale, e resta separata dal pube da una zona “sgombra” di residui bluastri. La corrispondenza sia a livello microscopico che macroscopico tra la ragione bluastra nel dromaeosauride di Pigeon Hill e l'intestino in Scipionyx supporta l'interpretazione della incrostazione addominale nel nuovo fossile come la traccia del suo intestino. Si tratta di uno dei pochissimi casi di preservazione intestinale in un dinosauro, ed il primo caso in un theropode molto prossimo agli uccelli.

Corrispondenza topografica tra la regione intestinale di Scipionyx (in alto) e la zona bluastra in Daurlong (in basso). L'asterisco indica la "zona vuota" tra intestino e pube. Immagine di Scipionyx per gentile concessione di Simone Maganuco, tratta dalla Monografia del 2011 (Dal Sasso e Maganuco, figura 145, ribaltata per confronto).


A questo nuovo dromaeosauride abbiamo dato il nome di Daurlong wangi (il Drago di Daur di Wang: il genere fa riferimento alla popolazione della regione da cui proviene il fossile, la specie è un omaggio al direttore del museo in cui è conservato il fossile).

Le nostre analisi filogenetiche collocano Daurlong come strettamente imparentato con Tianyuraptor e Zhenyuanlong in un clade più affine ad Eudromaeosauria che a Microraptoria, sebbene la robustezza di tale collocazione sia relativamente bassa, dato che questi tre dromaeosauridi mostrano un curioso mix di caratteri presenti anche in altri paraviani.

Ricostruzione in vivo di Daurlong (c) Ivan Iofrida (2022)


Ringrazio Wang per avermi coinvolto nello studio, Marco Auditore per la ricostruzione scheletrica, e Valentina Rossi per alcuni suggerimenti per le analisi. Ivan Iofrida e Francesco Delrio hanno realizzato le illustrazioni ufficiali di Daurlong.

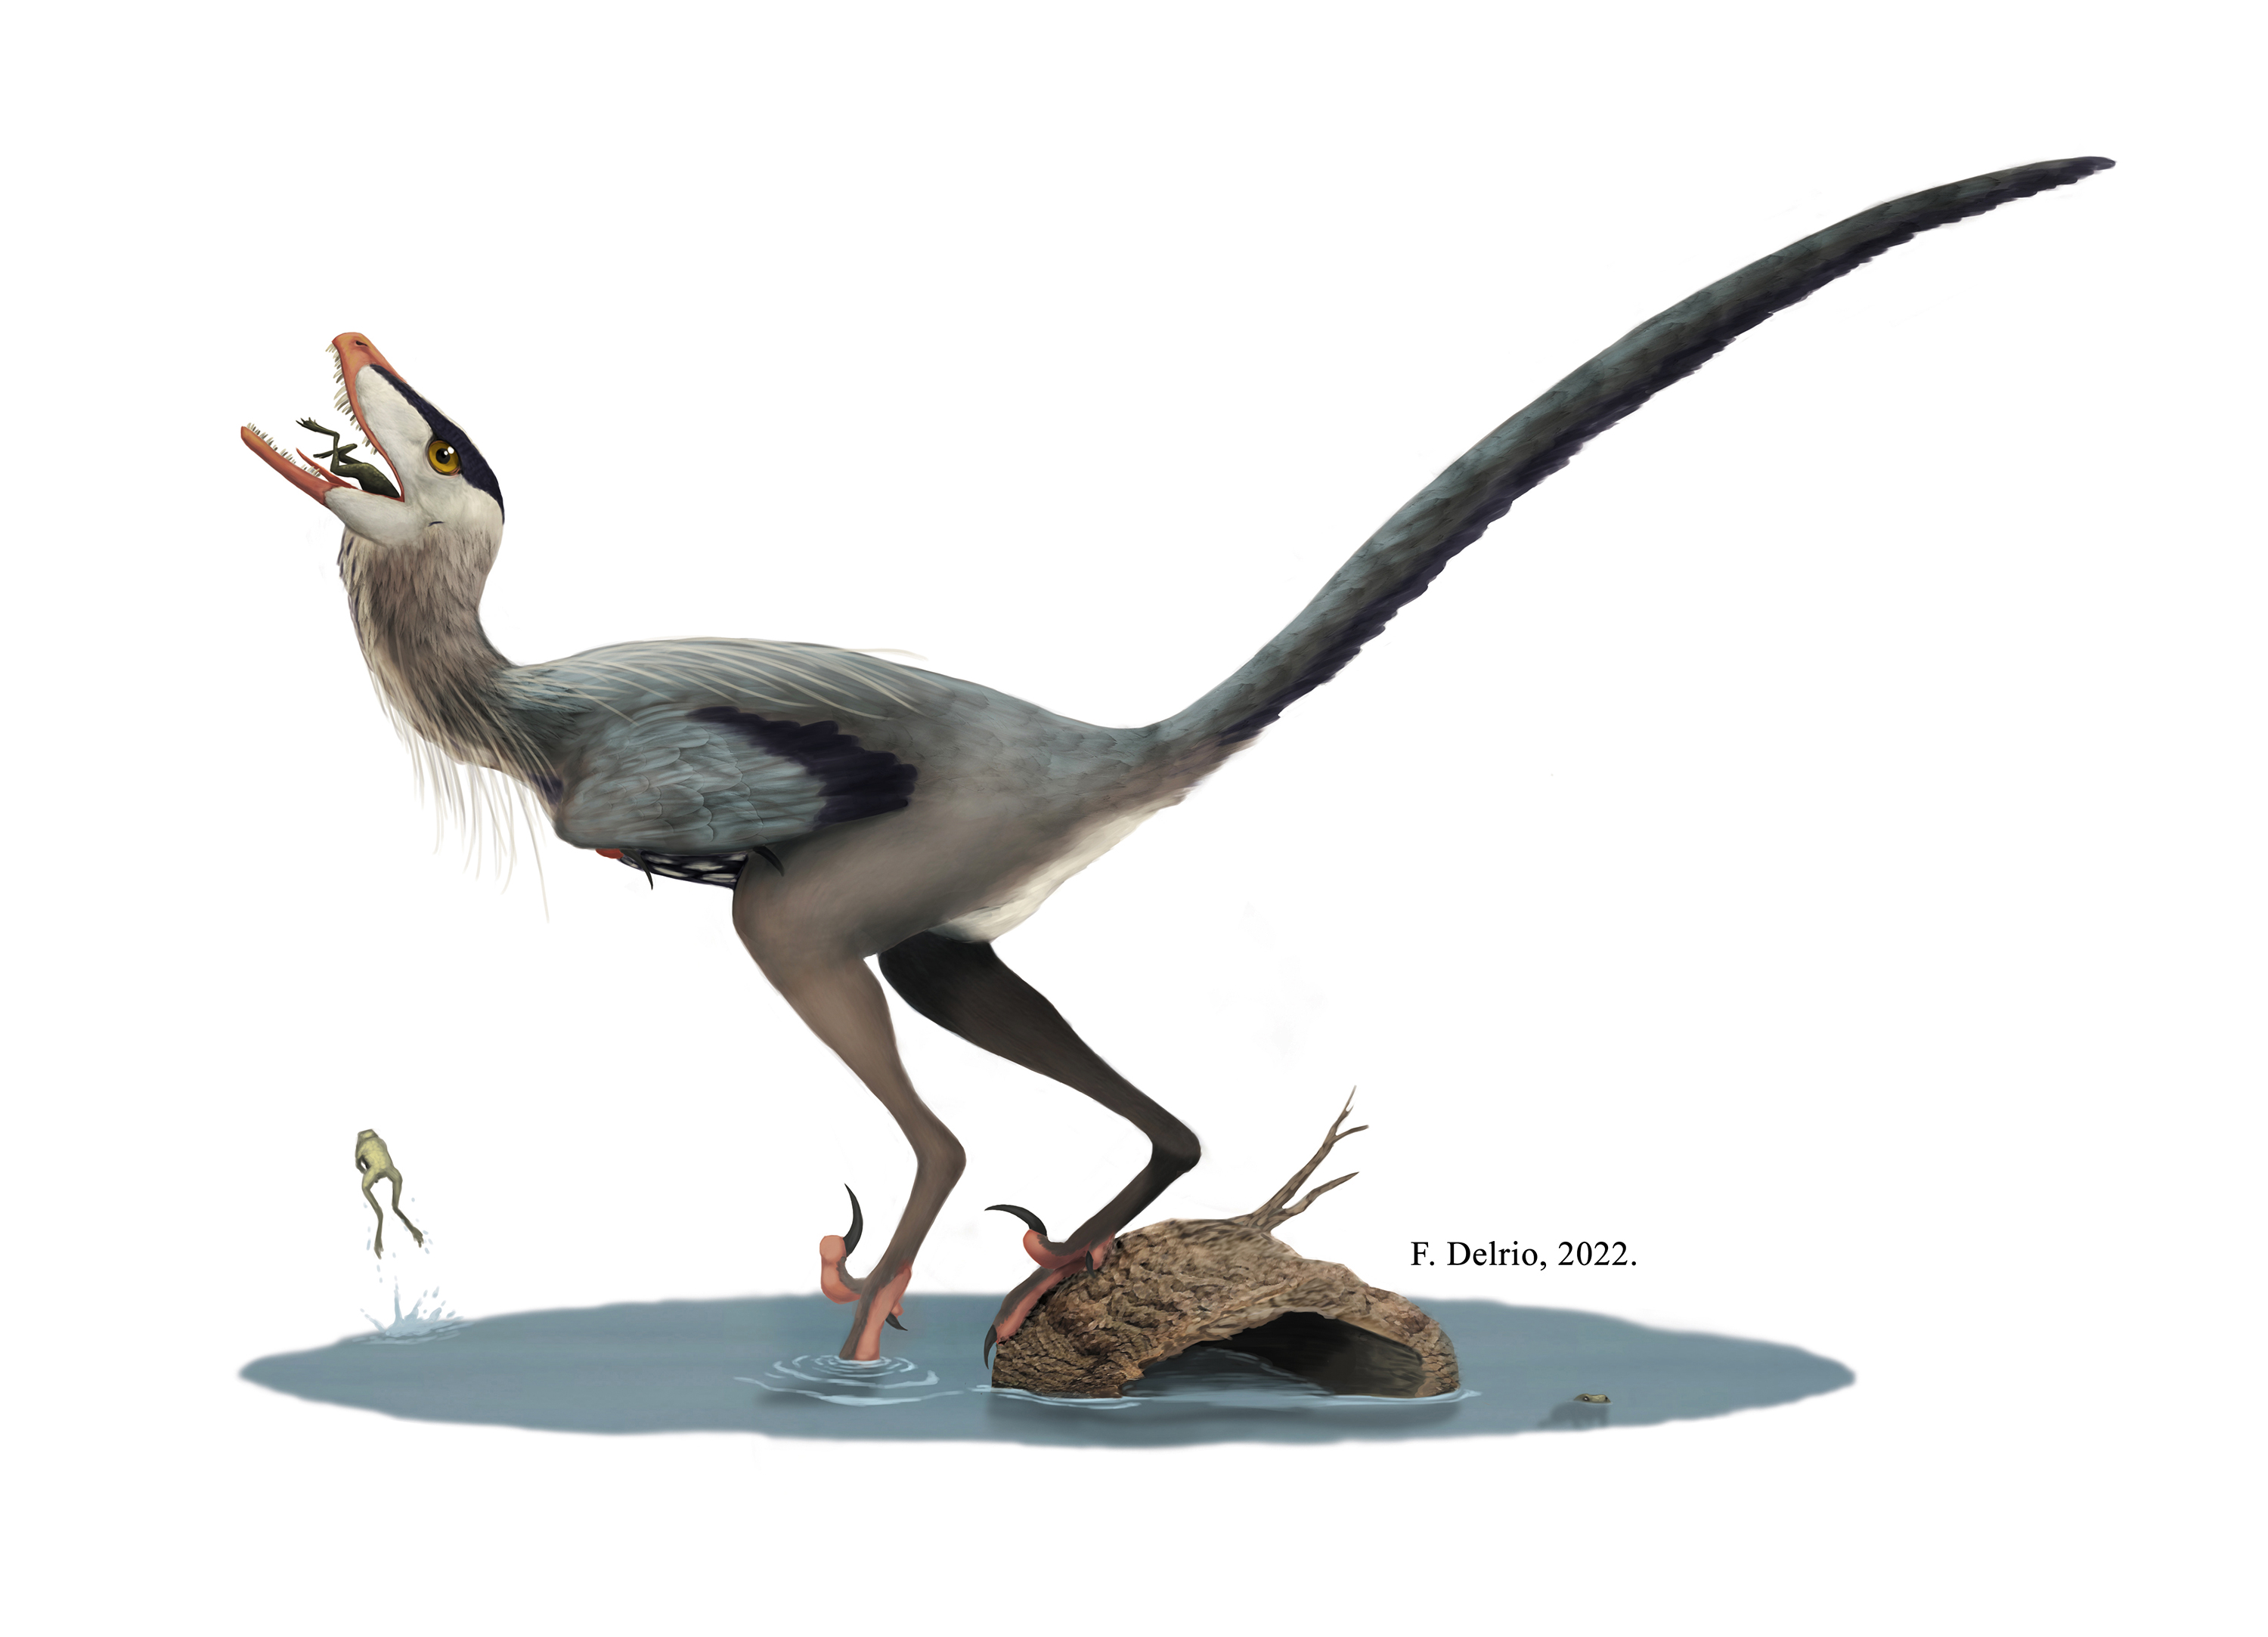
Un Daurlong banchetta con una rana di Pigeon Hill. (c) Francesco Delrio (2022)


Qui il podcast dedicato a questo nuovo dromaeosauride.

Bibliografia:

Wang, X., Cau, A., Guo, B. et al. Intestinal preservation in a birdlike dinosaur supports conservatism in digestive canal evolution among theropods. Sci Rep 12, 19965 (2022). https://doi.org/10.1038/s41598-022-24602-x

15 novembre 2022

Generatore automatico di frasi da Pterosaur Heresies

Questo è un generatore automatico di frasi dal più dannoso sito di disinformazione paleontologica esistente in rete, il famigerato contenitore di pseudoscienza "Pterosaur Heresies". Le frasi prodotte dal generatore sono ovviamente delle parodie umoristiche, mentre l'originale non fa ridere per niente.

Per ottenere nuove frasi, vi basta ricaricare la pagina.